Podchodząc do tej części mózgu, myślałem sobie:
„Ha! Płat potyliczny odpowiada głównie za wzrok. Łatwizna. Wrzucę trochę anatomii, trochę funkcji, trochę ciekawostek, prześlę artykuł do szefa i pójdę sobie obejrzeć Rodzinę Soprano”.
No i się myliłem. Jak do tego doszło? Nie wiem. W każdym razie Tony Soprano musiał na mnie trochę poczekać. Problem zaczął się w momencie, kiedy z pozornie prostego pytania:
„Jak mózg widzi?”
zrobiło mi się kilkanaście kolejnych:
Czy widzimy oczami, czy mózgiem? Dlaczego prawa półkula zajmuje się lewą stroną pola widzenia? Co właściwie trafia do płata potylicznego? Dlaczego jedne neurony lubią pionowe linie, a inne ukośne? Jak człowiek może nie widzieć przedmiotu, ale poprawnie wskazać, gdzie on leży? Jak można być niewidomym i jednocześnie twierdzić, że się widzi? Dlaczego można napisać zdanie, którego chwilę później nie potrafi się przeczytać?
I nagle artykuł, który miał powstać przed jednym odcinkiem serialu, zaczął wyglądać jak początek doktoratu.
Zacznijmy więc tak, jak lubię najbardziej. Od podstaw.
Płat potyliczny, czyli co właściwie miało być takie łatwe?
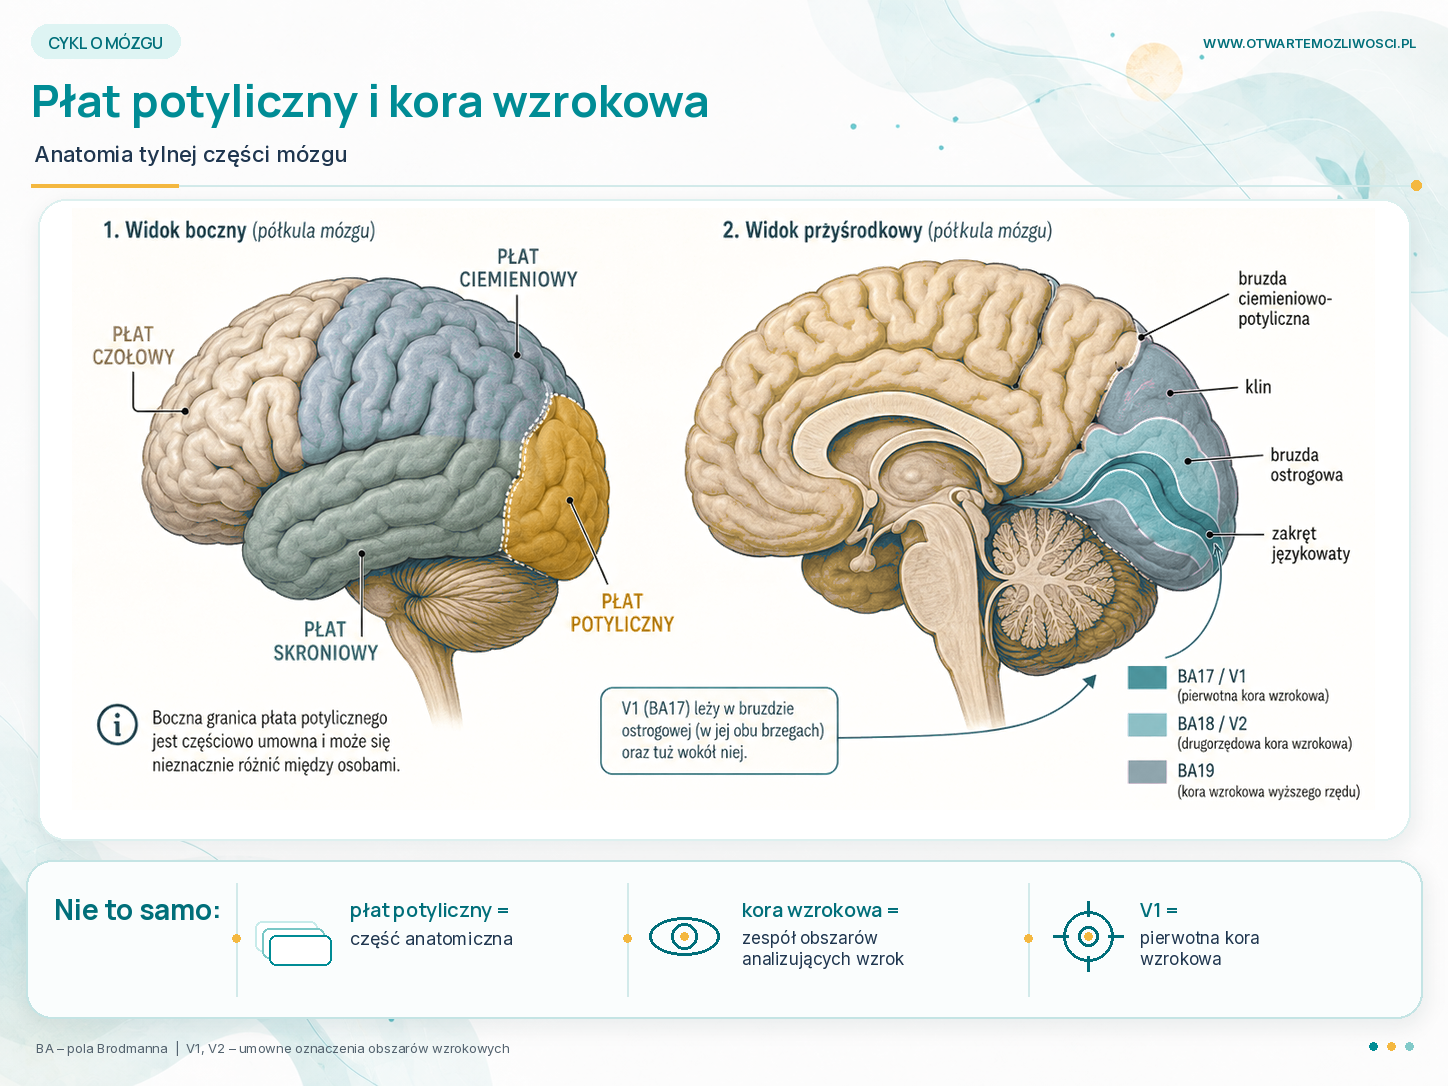
Płaty potyliczne znajdują się najbardziej z tyłu obu półkul mózgowych.
I już tutaj anatomia zaczyna robić drobne problemy.
Na przyśrodkowej powierzchni półkuli granicę z płatem ciemieniowym stosunkowo łatwo wskazać dzięki bruździe ciemieniowo-potylicznej. Kiedy jednak spojrzymy na mózg od boku, sytuacja staje się mniej elegancka. Nie znajduje się tam jedna wyraźna bruzda oznaczająca:
PŁAT CIEMIENIOWY ŻEGNA.
WITAMY W WOJEWODZTWIE PŁATA POTYLICZNEGO.
MOP Chrząstów 30 km.
Granica jest częściowo umowna. Płat potyliczny płynnie przechodzi w sąsiednie okolice ciemieniowe i skroniowe. Kevin Walsh - do którego w tym artykule będę co jakiś czas nawiązywał - w książce „Neuropsychologia kliniczna” zwraca uwagę na brak jednoznacznych punktów orientacyjnych na jego powierzchni grzbietowo-bocznej. Natomiast od strony wewnętrznej sytuacja wygląda znacznie ciekawiej. Znajduje się tam bruzda ostrogowa, a nad nią leży klin, zaś poniżej trafiamy na zakręt językowaty.
W ścianach bruzdy ostrogowej ukryta jest duża część naszego dzisiejszego głównego bohatera: pierwotna kora wzrokowa - V1.
I tu pojawił się pierwszy problem z moim planem „trochę anatomii i cyk Rodzina Soprano”. Bo trzeba rozróżnić trzy rzeczy. Płat potyliczny nie oznacza kory wzrokowej. Kora wzrokowa nie oznacza V1. Płat potyliczny jest częścią anatomiczną półkuli mózgowej. Kora wzrokowa obejmuje obszary uczestniczące w analizowaniu informacji wzrokowej. V1 jest natomiast pierwotną korą wzrokową, czyli pierwszym głównym obszarem kory, do którego trafia informacja płynąca klasyczną drogą wzrokową.
Najprościej potraktować to jak adres:
Poznań -> dzielnica -> konkretny budynek.
Wszystko znajduje się na jednej mapie, ale używanie tych nazw zamiennie miałoby mniej więcej tyle sensu, co powiedzenie kurierowi DPD „Mieszkam w Poznaniu. Blok taki szarawy i ma okna. No, to się widzimy”.
Brodmann - niezły z niego numer
Na początku XX wieku niemiecki neurolog Korbinian Brodmann podzielił korę mózgową na obszary różniące się budową komórkową.
W obrębie płata potylicznego szczególnie ważne są pola:
17, 18 i 19.
Pole 17 odpowiada w przybliżeniu V1. Nazywane jest także korą prążkowaną ze względu na widoczne w jej budowie pasmo mielinowanych włókien - prążek Gennariego. Pole 18 otacza pole 17, a bardziej obwodowo znajduje się pole 19. Oczywiście Brodmann nie siedział przy preparacie i nie mówił:
Ty będziesz siedemnastką, Ty osiemnastką, A ty masz masz jakąś taką dziwną aparycję, więc od dziś nazywasz się „dziewiętnaście”.
Numery wynikały z różnic w mikroskopowej organizacji kory. Obecnie stosujemy również nazwy V1, V2, V3, V4, V5/MT i wiele kolejnych.
Na tym etapie bardzo chciałem zrobić sobie prostą tabelkę:
V1 - podstawy obrazu
V2 - kontury, tekstury i relacje między elementami
V3 - bardziej złożona forma i informacje przestrzenno-ruchowe
V4 - barwa i bardziej złożony kształt
V5/MT - ruch
i uznać temat za załatwiony.
Mózg powiedział:
„Hehe… Nie”.
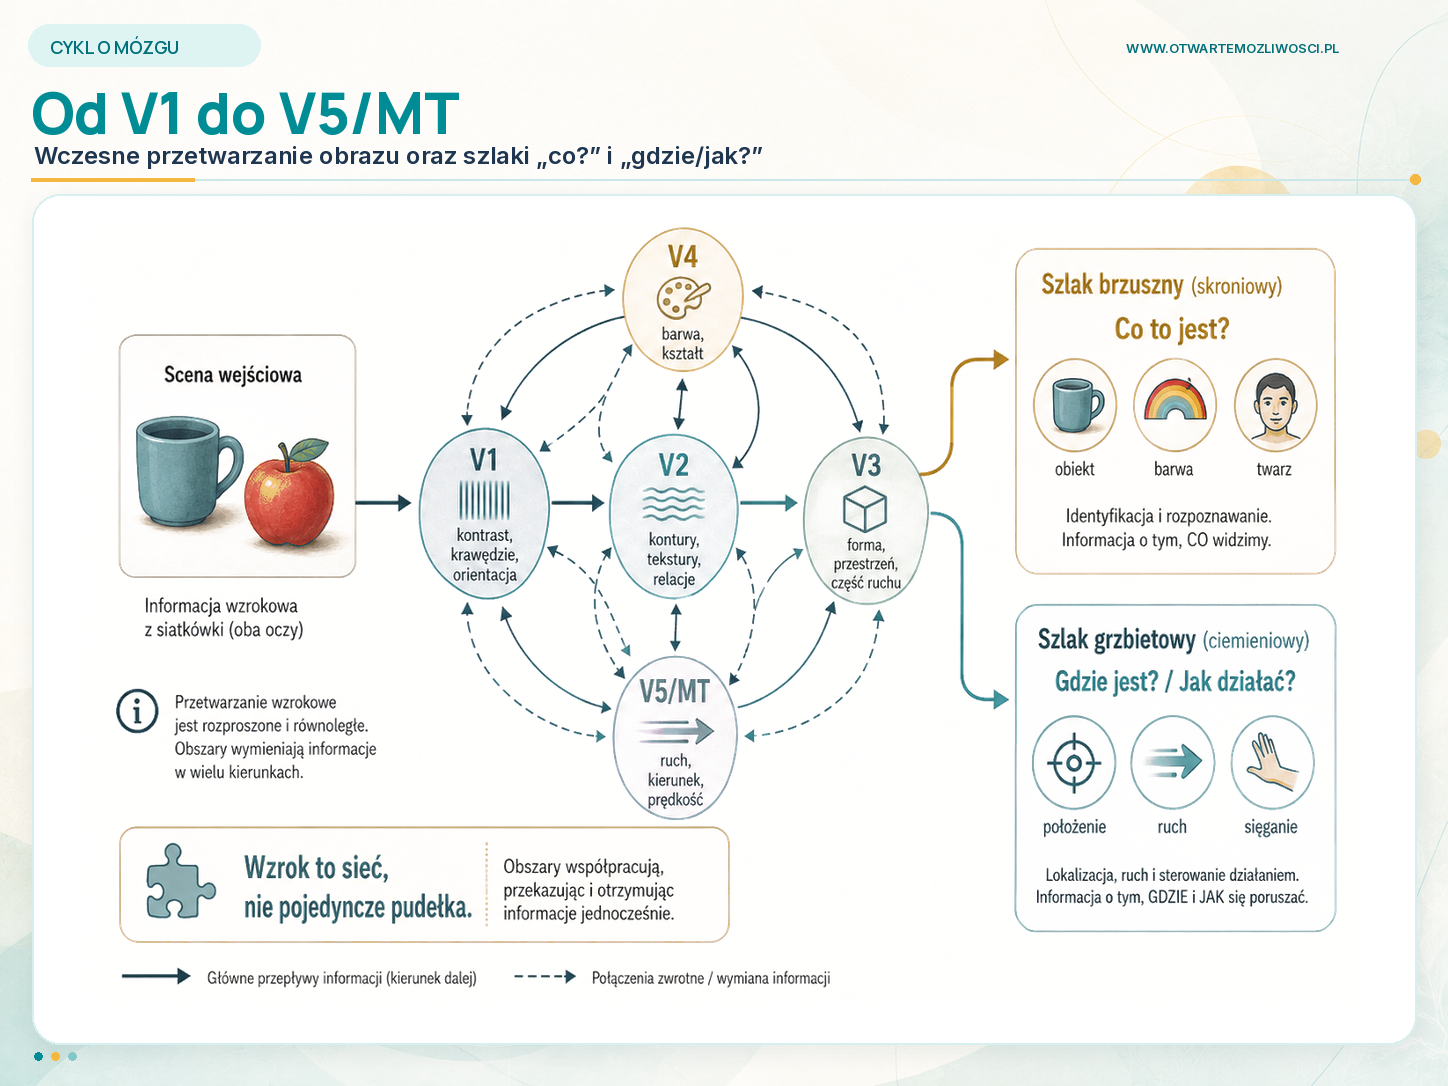
Obszary te są ze sobą intensywnie połączone. Informacje płyną między nimi w wielu kierunkach, także zwrotnie. To nie zakład produkcyjny, w którym obraz przejeżdża taśmą od stanowiska do stanowiska, a pracownik numer trzy przybija mu pieczątkę:
„KOLOR: CZERWONY.
Zatwierdzono przez dział V4 instytutu przetwarzania bodźców”.
To rozbudowana sieć. Człowiek widzi V1, V2, V3, V4 i V5 i odruchowo myśli, że obraz będzie sobie grzecznie przechodził z jedynki do dwójki, z dwójki do trójki, potem do czwórki, piątki i można zamykać interes. Niestety nie. Poszczególne obszary mają pewne charakterystyczne specjalizacje, ale nie działają jak pięć osobnych pudełek.
A zanim cokolwiek do nich trafi, musimy jeszcze przejść od oka na tył głowy.
Oczy patrzą, mózg porządkuje bałagan
Wyobraźmy sobie kubek stojący na stole. Światło odbite od niego wpada do oka i dociera do siatkówki. Pręciki i czopki w oku reagują na światło, a informacja zaczyna być przetwarzana już przez kolejne warstwy komórek siatkówki. To ważne, bo oko nie jest po prostu aparatem, który robi zdjęcie i wysyła je do mózgu.
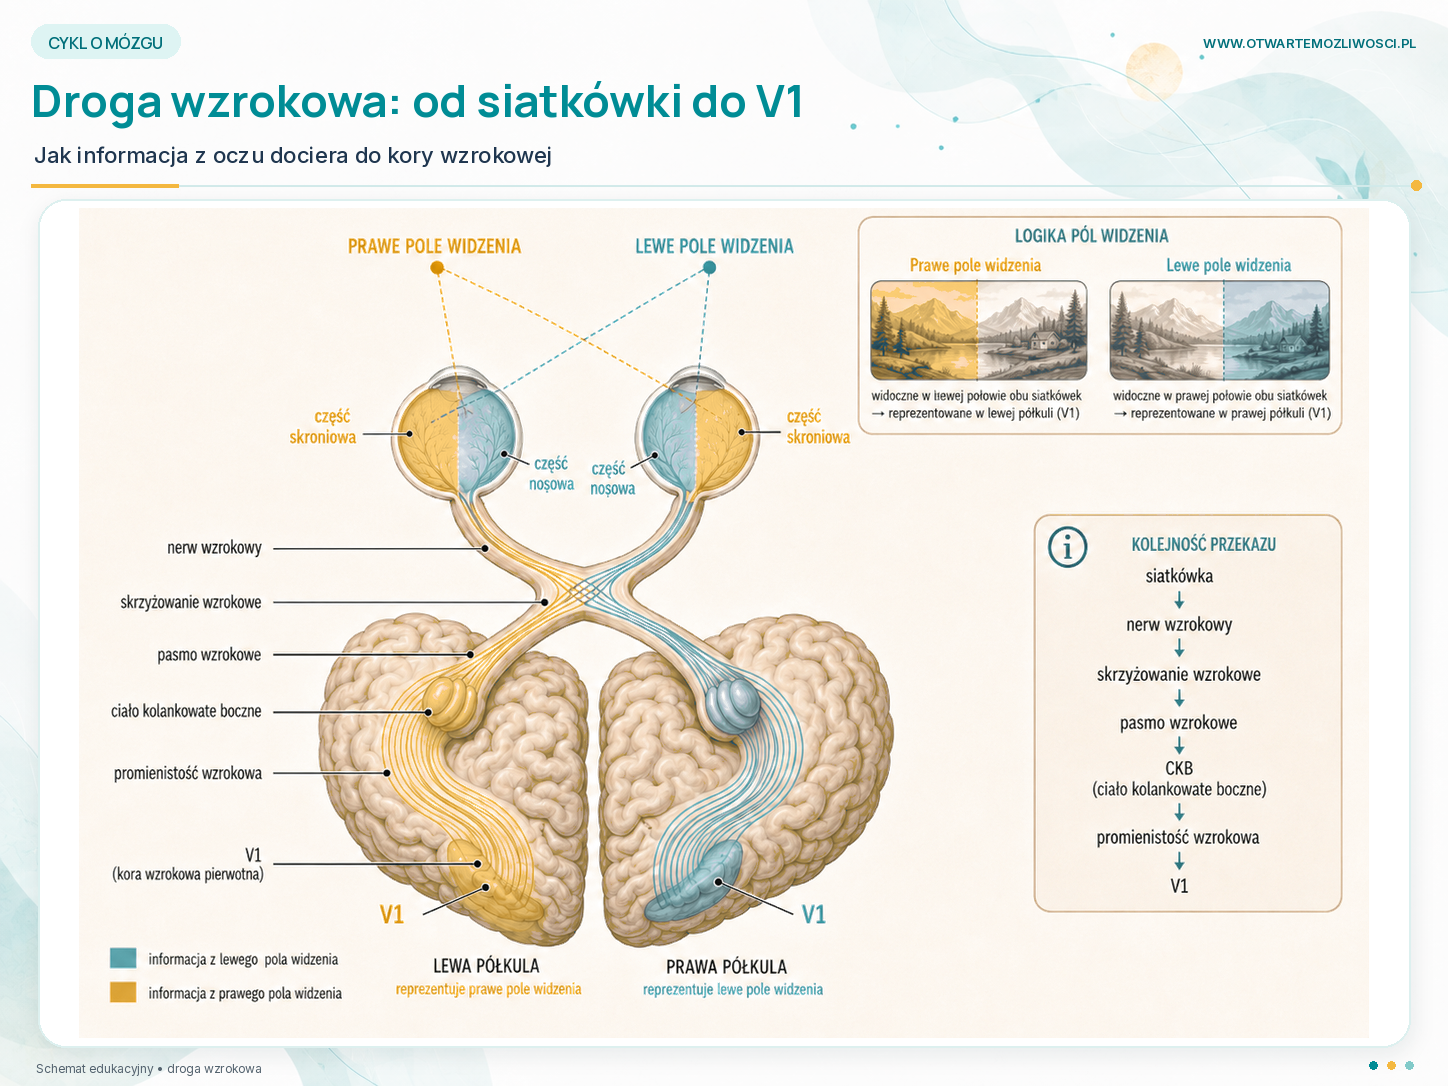
Przetwarzanie zaczyna się jeszcze zanim informacja opuści oko. Aksony komórek zwojowych tworzą następnie nerw wzrokowy. Oba nerwy spotykają się w skrzyżowaniu wzrokowym. I teraz rzecz, którą początkowo sam miałem źle poukładaną.
Nie działa to według zasady: prawe oko à lewa półkula oraz: lewe oko à prawa półkula.
Część włókien przechodzi w skrzyżowaniu na przeciwną stronę, a część pozostaje po swojej. Efekt jest taki, że prawa półkula przetwarza lewą połowę pola widzenia, a lewa półkula - prawą, i każda z nich dostaje przy tym informacje z obu oczu.
Następnie sygnał wędruje pasmami wzrokowymi do ciał kolankowatych bocznych wzgórza, skąd poprzez promienistość wzrokową trafia do V1. Czyli:
siatkówka à nerw wzrokowy à skrzyżowanie wzrokowe à pasmo wzrokowe à ciało kolankowate boczne à promienistość wzrokowa à V1.
Kiedy pierwszy raz to sobie rozpisywałem, poczułem się, jakbym zapytał w małej wsi o drogę do domu ciotki, u której dawno nie byłem:
Tam prosto. Za drugim krzyżem w lewo. Potem będzie taki dom co kiedyś był żółty, ale teraz jest zielony. Koło sklepu, który zamknęli w 2018 roku w prawo. Jak Pan zobaczysz brązowe krowy, jesteś Pan na miejscu.
Na szczęście układ wzrokowy zna tę trasę na pamięć i nie musi dzwonić:
- No halo, ciało kolankowate? Jestem przy wzgórzu i widzę jakieś fałdy. Gdzie mam jechać teraz?
Dopiero po tej podróży docieramy do V1, Czyli miejsca, które według mojego pierwotnego planu miało być po prostu „tym od wzroku”.
Mapa świata z tyłu czaszki
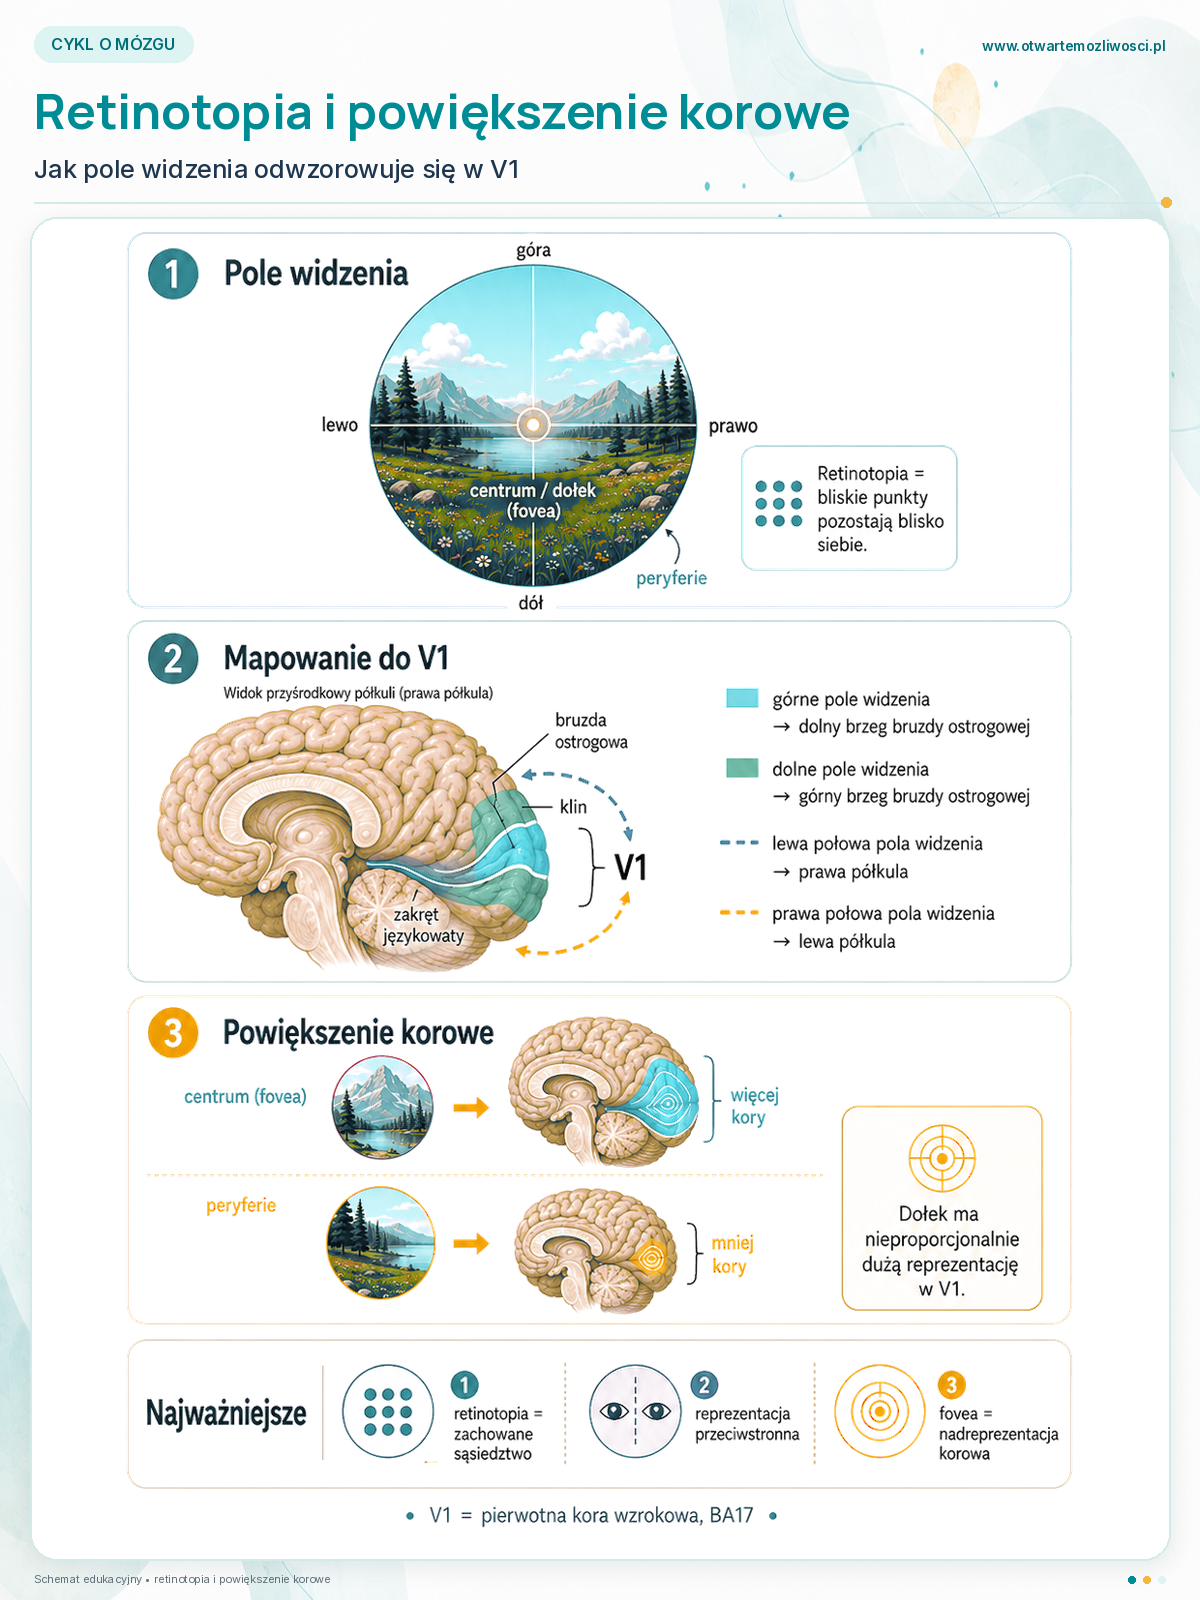
V1 jest zorganizowana retinotopowo. Czyli przestrzenny układ informacji na siatkówce znajduje swoje uporządkowane odwzorowanie w korze.
W dużym uproszczeniu sąsiadujące fragmenty pola widzenia mają sąsiadujące reprezentacje w V1. Mózg ma więc z tyłu głowy coś w rodzaju mapy przestrzeni, którą widzimy przed nami. Z tym, że ta mapa nie jest sprawiedliwa.
Centralna część pola widzenia (ta, dzięki której czytamy drobny druk i widzimy szczegóły twarzy) otrzymuje w korze nieproporcjonalnie dużo miejsca. Peryferie zdecydowanie mniej. To tzw. powiększenie korowe.
Gdyby V1 była rynkiem nieruchomości, centrum pola widzenia dostałoby apartament na ostatnim piętrze, prywatny taras, klimatyzację kanałową i dwa miejsca w garażu.
Peryferie wylądowałyby w kawalerce przy zsypie ze słowami:
„Czynsz wysoki, ale za to do tramwaju blisko i ostatnio rzadziej policja przyjeżdża do sąsiadów”.
Niesprawiedliwe? Być może. Funkcjonalne? Jak najbardziej. To właśnie centralnym widzeniem analizujemy najbardziej szczegółowe elementy obrazu.
Neuron od pionowej kreski
No dobrze, Informacja dotarła do V1. Patrzę na regał. Myślę: „tak to regał, to dobre miejsce na regał”. I tutaj kolejny raz przekonałem się, że mózg wyjątkowo niechętnie wykonuje rzeczy w sposób, który byłby wygodny do opisania w artykule. V1 nie dostaje bowiem informacji:
„Regał -> Drewno -> Czarny -> IKEA -> Prawdopodobnie KALLAX”.
Wczesne obszary analizują znacznie prostsze właściwości obrazu:
kontrast,
krawędzie,
położenie,
orientację,
wielkość,
ruch,
strukturę przestrzenną.
David Hubel i Torsten Wiesel wykazali między innymi, że neurony kory wzrokowej mogą mieć bardzo konkretne preferencje dotyczące orientacji linii i krawędzi. Jeden reaguje najlepiej na pion, inny na poziom, jeszcze inny na linię ustawioną ukośnie.
Każdy ma również własne pole recepcyjne, czyli fragment pola widzenia, którego zmiany mogą wpływać na jego aktywność.
Wróćmy do naszego regału.
Nasza świadomość:
„regał”.
A tymczasem w pokoju obok trwa zebranie techniczne:
- widzę pion!
- a ja drugi pion!
- o!pozioma krawędź!
- niezły kontrast!
- jeszcze jeden pion!
- Ej, ej, ej! ale nie wszyscy naraz!
Po czym kilka pięter wyżej jakiś neurobiologiczny kierownik zmiany spogląda na dokumentację i oznajmia:
- Dobra. KALLAX. Możecie iść na przerwę.
To oczywiście tylko metafora. Żaden pojedynczy neuron nie wie, czym jest KALLAX. Rozpoznanie obiektu powstaje dzięki współpracy olbrzymich populacji neuronów i kolejnych obszarów mózgu.
Tak czy inaczej płat potyliczny nadal nie stał się „łatwizną”.
V1 to dopiero początek
W tym miejscu mógłbym właściwie uznać, że skoro wyjaśniliśmy sobie V1, to temat kory wzrokowej mamy z głowy. Problem w tym, że kilkanaście akapitów wcześniej sam bezczelnie wymieniłem V2, V3, V4 i V5/MT, więc próba przemknięcia obok nich ze wzrokiem wbitym w sandały szukając na nich sznurówek byłaby co najmniej podejrzana.
Zobaczmy więc co dzieje się dalej.
I jeszcze raz zaznaczę: nie wyobrażajmy sobie tych obszarów jak pięciu pracowników siedzących przy jednej taśmie, którzy podają sobie obraz z rąk do rąk zgodnie z numerem na identyfikatorze. To nadal rozbudowana sieć połączeń. Poszczególne obszary mają jednak swoje charakterystyczne specjalizacje i właśnie one pomagają nam zrozumieć, jak z prostych krawędzi i kontrastów ostatecznie robi się „regał”.
V2 - dobra, ale czy te kreski nie tworzą czegoś razem?
V2, czyli wtórna kora wzrokowa, znajduje się bezpośrednio obok V1 i otrzymuje od niej ogromną ilość informacji. Tutaj analiza zaczyna robić się trochę bardziej złożona. V2 uczestniczy między innymi w przetwarzaniu konturów, tekstur, relacji pomiędzy fragmentami obrazu i bardziej złożonych kombinacji krawędzi.
Czyli jeśli V1 informuje:
pionowa krawędź!
pozioma!
tutaj kontrast!
to V2 zaczyna podejrzewać:
Chwileczkę. Te wszystkie elementy chyba mają ze sobą coś wspólnego.
To nadal nie jest:
„KALLAX, 77 × 147 cm, kolor czarnobrązowy, stan używany, odbiór osobisty Rataje”.
Ale powoli przestajemy mieć przed sobą przypadkowy zestaw linii. Zaczyna wyłaniać się struktura.
V3 - tutaj instrukcja zaczyna się komplikować
Następnie mamy V3. I tutaj bardzo chciałbym podać jedno eleganckie zdanie w stylu „V3 odpowiada za to i za tamto”, postawić kropkę, napić się kawy i pójść dalej. Niestety funkcji V3 nie da się aż tak wygodnie zamknąć w jednym haśle.
Obszar ten bierze udział w dalszym przetwarzaniu formy, organizacji przestrzennej obrazu oraz części informacji związanych z ruchem. Do tego istnieją jeszcze obszary określane między innymi jako V3A, a w niektórych podziałach również V3B, silniej związane z analizą przestrzeni i ruchu.
Czyli doszliśmy ledwie do trójki, a numeracja już zaczęła produkować wersje rozszerzone:
V3.
V3A.
V3B.
Nie zdziwię się, jak się okaże, że istnieje jeszcze V3 Pro Max 256 GB i szczerze mówiąc, na tym etapie nie będę już niczego wykluczał.
Najważniejsze jest jednak to, że na tym poziomie mózg coraz mniej interesuje się pojedynczym „tu jest kreska”, a coraz bardziej tym, jak elementy są ułożone względem siebie i co dzieje się z większą częścią obrazu.
V4 - czerwone jabłko jest bardziej skomplikowane niż wygląda
Dalej dochodzimy do V4. Najpopularniejszy skrót brzmi:
V4 = kolor.
I jest w nim sporo prawdy, ale nie cała prawda. V4 jest bardzo silnie związana z przetwarzaniem barwy, lecz uczestniczy również w analizowaniu kształtu i bardziej złożonych cech powierzchni.
Wyobraźmy sobie czerwone jabłko. Na wcześniejszych etapach układ wzrokowy analizuje między innymi granice obiektu, kontrast, położenie i podstawowe informacje o barwie. W dalszym przetwarzaniu zaczyna się z tego robić coś bardziej w rodzaju:
„czerwona powierzchnia o określonym kształcie”.
I właśnie tutaj coraz mocniej zbliżamy się do późniejszego pytania:
„co ja właściwie widzę?”
V4 nie jest oczywiście neurologicznym pracownikiem warzywniaka, który patrzy na obraz i mówi:
„Ligol. 4,99 za kilogram. Trochę poobijany”.
Ale jesteśmy już bardzo daleko od etapu „tu jest pionowa linia”.
V5/MT - ej, to się rusza
Na koniec naszej podstawowej piątki zostaje V5, nazywana również MT - middle temporal area. Tutaj specjalizacja jest znacznie bardziej charakterystyczna. V5/MT jest szczególnie związana z analizowaniem ruchu - jego kierunku, prędkości i tego, jak ruch wielu elementów składa się na większy wzorzec.
Wróćmy więc do naszego jabłka. Tylko teraz ktoś położył je zbyt blisko krawędzi stołu.
V1:
„Krawędź. Kontrast. Bodziec tutaj”.
V2:
„Te krawędzie należą chyba do jednej rzeczy”.
V3:
„Cała ta struktura zmienia położenie”.
V4:
„Czerwona powierzchnia. Określony kształt”.
V5/MT:
„Też to widzicie, to chyba leci w dół”.
A nasza świadomość:
„O cholera, jabłko spada”.
Jeżeli wszystko działa prawidłowo, próbujemy je złapać. Jeśli nie zdążymy, pozostaje nam jedna z bardziej zaawansowanych funkcji ludzkiego mózgu:
rozejrzeć się, czy ktoś widział.
I dopiero teraz zaczyna być dobrze widać, dlaczego wzrok nie kończy się w V1. Część przetwarzania coraz mocniej zmierza w stronę pytania „co ja właściwie widzę?”, a część w stronę „gdzie to jest, jak się porusza i co mam z tym zrobić?”.
„Co?” i „gdzie?”
Kiedy informacja zostanie wstępnie przetworzona w korze wzrokowej wtedy rusza dalej. Klasycznie opisujemy dwa główne kierunki.
1. Szlak brzuszny, prowadzący bardziej w stronę płata skroniowego, związany jest szczególnie z odpowiedzią na pytanie:
„co to jest?”
Pomaga między innymi w rozpoznawaniu obiektów, kształtów, barw i twarzy.
2. Szlak grzbietowy, biegnący bardziej w stronę płata ciemieniowego, interesuje się bardziej:
„gdzie to jest?” oraz „jak mam wobec tego działać?”
Weźmy kubek.
Ad.1. Szlak brzuszny:
„Kubek”.
Ad.2. Szlak grzbietowy:
„Czterdzieści centymetrów od prawej ręki. Ucho skierowane w lewo. Palce trzeba zacisnąć za około pół sekundy”.
Pierwszy system zapobiega więc próbie wypicia herbaty z doniczki. Drugi natomiast pilnuje, żebyśmy po prawidłowym rozpoznaniu kubka nie sięgnęli obok, nie przewrócili telefonu, nie zahaczyli o solniczkę i nie podpalili rękawem świeczki zapalonej wyłącznie dlatego, że ktoś w domu przeczytał artykuł pod tytułem: „7 duńskich sposobów, które odmienią twoją jesień”.
I tutaj zaczęło być dla mnie jasne, dlaczego zdanie „płat potyliczny odpowiada za wzrok” jest prawdziwe, ale potwornie niepełne. Widzenie nie siedzi w jednym miejscu. To rozległy system.
Mózg trochę oszukuje
Kolejny problem z prostym pojmowaniem widzenia? Nie widzimy dokładnie wszystkiego, co trafia do oczu. Ba. Każdy z nas ma w polu widzenia miejsce, z którego nie dostaje żadnego obrazu. To plamka ślepa - fragment siatkówki, gdzie wychodzi nerw wzrokowy i nie ma fotoreceptorów. Jednak nie chodzimy po świecie z małą czarną dziurą przyklejoną do obrazu. Mózg ją „sprząta”. Wykorzystuje informacje z drugiego oka oraz otoczenia i dostarcza nam spójne doświadczenie wizualne.
Podobne zjawiska obserwowano u osób z ubytkami pola widzenia. Pacjenci potrafią dzięki ruchom oczu, uwadze i doświadczeniu częściowo kompensować nawet pokaźne deficyty. Walsh opisuje również tzw. uzupełnianie, gdy osoba może mieć doświadczenie całego kształtu mimo braku informacji z jego części.
Czyli nasz mózg nie działa jak kamera monitoringu, a bardziej jak kucharz z dużym doświadczeniem. Dostaje trochę danych z oczu, trochę z pamięci, trochę z kontekstu, dorzuca przewidywania, miesza, próbuje, poprawia i podaje gotowy świat, bez szczegółowego wyjaśniania receptury, A kiedy czegoś zabraknie, mówi „Dobra tam, czymś to Zastąpimy”. Co oczywiście działa znakomicie do momentu, kiedy nie działa.
Kiedy znika połowa świata
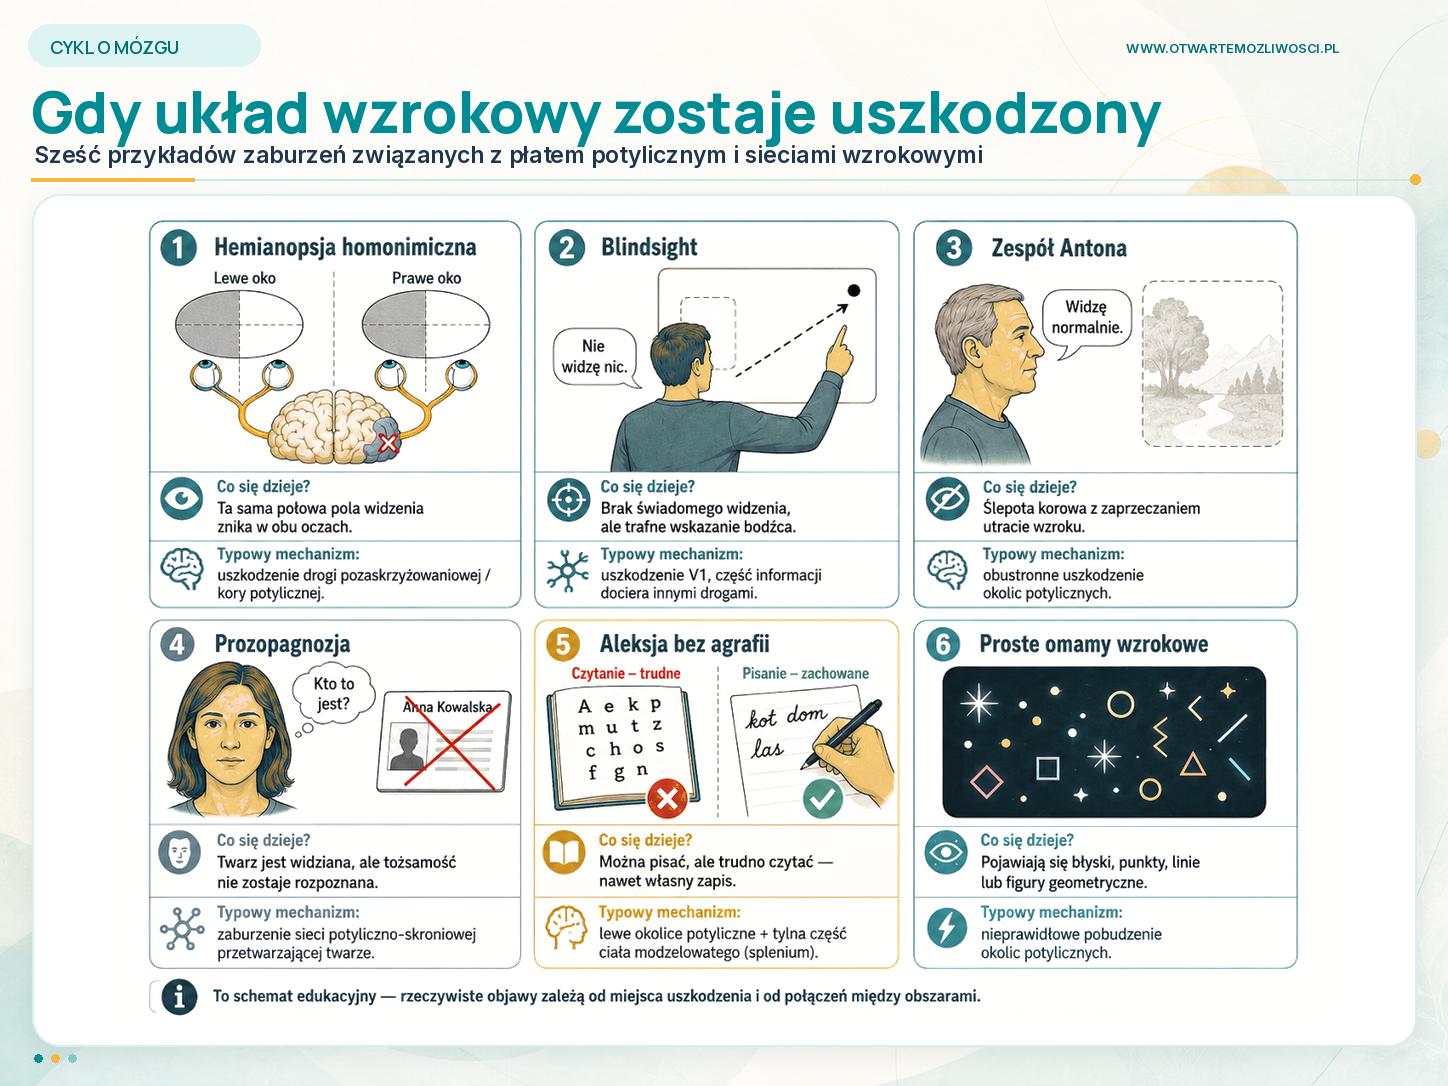
Uszkodzenie kolejnych fragmentów drogi wzrokowej daje różne rodzaje zaburzeń. Jeżeli ucierpi nerw wzrokowy, można utracić widzenie w jednym oku. Jeżeli zaś uszkodzone zostanie skrzyżowanie, pojawiają się inne charakterystyczne ubytki. Natomiast uszkodzenie drogi za skrzyżowaniem może doprowadzić do hemianopsji homonimicznej (spokojnie, sam mam problem by to wymówić), czyli utraty tej samej połowy pola widzenia w obu oczach.
Przykładowo uszkodzenie prawej okolicy potylicznej może odebrać lewą część pola widzenia, lecz nie musi ona wyglądać jak czarna kurtyna. Człowiek z czasem może nauczyć się wykonywać dodatkowe ruchy głową i oczami, częściowo kompensując deficyt.
To trochę jak kierowca, któremu zdemontowano połowę przedniej szyby i zamontowano mu płytę OSB, ale zamiast pojechać do mechanika opanował wychylanie się przez środek samochodu do tego stopnia, że po roku stwierdził:
„Jeździ się normalnie. Tylko na rondzie Solidarności trzeba bardzo wierzyć w siebie”.
I teraz dochodzimy do momentu, w którym mój plan szybkiego artykułu o wzroku definitywnie umarł.
Nie widzę, ale wiem
Blindsight, czyli widzenie mimo ślepoty.
Pacjent ma uszkodzoną V1.
— Widzisz punkt?
— Nie.
— A możesz zgadnąć, gdzie się pojawił?
— Mogę.
Wskazuje. Trafia. Jeszcze raz. Znowu.
Po wielu próbach okazuje się, że trafień jest znacznie więcej, niż wynikałoby ze zwykłego przypadku. Człowiek nie ma świadomego doświadczenia widzenia bodźca, a jednak jego mózg potrafi wykorzystać część informacji na jego temat. Dzieje się tak dlatego, że V1 nie jest jedynym odbiorcą sygnałów wzrokowych. Istnieją również inne drogi prowadzące między innymi do struktur śródmózgowia.
I tutaj pierwszy raz podczas przygotowywania tego tekstu autentycznie pomyślałem „No okej. W takim razie co właściwie oznacza słowo widzieć?”
Nie znalazłem już wtedy przestrzeni, żeby myśleć o Rodzinie Soprano.
Nie widzę, ale twierdzę, że widzę
A skoro poprzedni przypadek był zbyt prosty, mózg wpuszcza teraz nas scenę zespół Antona.
Człowiek jest niewidomy wskutek uszkodzenia mózgu, ale nie zdaje sobie z tego sprawy. Może wręcz zaprzeczać ślepocie. Walsh opisuje pacjenta, który siedząc naprzeciwko niego opisał jego wygląd. Tyle że żaden element opisu nie był prawdziwy. Inni pacjenci wyjaśniali brak obrazu np. „jest noc” lub „jestem w ciemnej piwnicy”.
Czyli mózg nie stwierdza:
„nic nie widzę”.
Stwierdza:
„widzę, tylko warunki oświetleniowe są dzisiaj skandaliczne”.
Po przeczytaniu tego fragmentu książki zrobiłem sobie kawę i przez chwilę zastanawiałem się, ile razy mój własny mózg z podobną pewnością siebie wyprodukował jakąś kompletną bzdurę, tylko dlatego, że nie lubił pustych miejsc w historii. Potem uznałem, że są granice introspekcji.
Widzę twarz. Tylko czyją?
Jeszcze dalej mamy prozopagnozję. Osoba widzi twarz. Mózg potrafi dostrzec nos, oczy i usta. Wie, że patrzy na ludzką twarz, ale nadal może nie wiedzieć, kto to jest.
Walsh opisuje między innymi przypadek farmera, który oprócz problemów z rozpoznawaniem ludzi przestał również rozpoznawać własne krowy.
Wyobraźmy sobie poranek.
Farmer wychodzi przed dom. Stoi krowa. Mózg twierdzi:
„Krowa”.
Farmer:
„Basia?”
Mózg:
„Nie znam kobiety”.
Tutaj jednak potrzebne jest zastrzeżenie.
Prozopagnozja nie jest po prostu „uszkodzeniem miejsca od twarzy w płacie potylicznym”. Rozpoznawanie twarzy opiera się na rozbudowanej sieci potyliczno-skroniowej. Sam Walsh pokazuje, jak rozwój neuroobrazowania komplikował wcześniejsze, prostsze modele lokalizacji tej funkcji.
I zaczyna się wyłaniać pewien motyw tego artykułu. Za każdym razem, kiedy chcemy powiedzieć „ten kawałek mózgu robi dokładnie to” mózg podnosi rękę i mówi:
„Nooo… nie do końca”.
Mogę napisać. Nie mogę przeczytać.
A teraz mój faworyt, czyli aleksja bez agrafii.
Pacjent mówi. Rozumie mowę. Pisze. Może napisać:
„Jutro kupię ziemniaki”.
Następnie patrzy na własne zdanie i nie potrafi go odczytać.
W klasycznej postaci tego zespołu występuje między innymi uszkodzenie lewego płata potylicznego oraz tylnej części ciała modzelowatego. Problem nie polega więc na tym, że pacjent „zapomniał czytać”. System językowy istnieje. Pisanie istnieje. Informacja wzrokowa istnieje. Tyle że droga, która ma dostarczyć jedno do drugiego, została uszkodzona. To trochę jak firma, w której wszystkie działy nadal pracują.
Księgowość jest. Sekretariat jest. Magazyn jest. Produkcja działa.
Tylko ktoś podczas remontu przeciął światłowód pomiędzy budynkami i od poniedziałku księgowość przekazuje faktury do magazynu gołębiem.
I właśnie tutaj szczególnie dobrze widać, że w mózgu ważne są nie tylko miejsca, ale również połączenia pomiędzy miejscami.
Uraz V1, czyli kiedy budynek stoi, ale firma nie działa
W badaniu Jana Frankowskiego, Andrzeja Foika i współpracowników u myszy wywołano stosunkowo łagodny uraz V1. Strukturalnie kora pozostawała w dużej mierze zachowana. Mimo tego gęstość neuronów zmniejszyła się o około 35%. Utrata neuronów hamujących obejmowała też większy obszar niż utrata neuronów pobudzających.
Jeszcze ciekawsze były badania funkcji. U zdrowych zwierząt około 90% rejestrowanych neuronów reagowało na bodziec świetlny. Po dwóch tygodniach od urazu było to około 32%. Po trzech miesiącach około 49%.
Odpowiedzi były też znacznie słabsze, a neurony gorzej różnicowały między innymi orientację i wielkość bodźca. Znacząco zmniejszyła się również amplituda wzrokowych potencjałów wywołanych.
Oczywiście to były myszy. Nie można więc po uderzeniu głową o otwarte drzwiczki szafki kuchennej wyjąć kalkulatora i powiedzieć „No dobra, minus trzydzieści pięć procent V1”, ale ten eksperyment pokazuje coś bardzo ważnego - niewielkie uszkodzenie może prowadzić do ogromnego zaburzenia działania sieci neuronów.
Wyobraźmy sobie biuro:
Budynek stoi. Okna całe. Komputery są. Na recepcji nawet fikus nadal żyje, choć od ostatniej restrukturyzacji podlewa go chyba wyłącznie opatrzność. Tyle że jedna trzecia pracowników zniknęła. Serwer odpowiada tylko we wtorki. Komunikator firmowy wyświetla błąd 504, a kierownik sprzedaży właśnie próbuje wysłać umowę do klienta, wkładając ją do mikrofalówki.
Firma istnieje, ale niekoniecznie należy oczekiwać rekordowego kwartału.
Czasem płat potyliczny sam coś nam pokaże
Nieprawidłowe pobudzenie okolic potylicznych może prowadzić do omamów wzrokowych. Najczęściej są one dość proste:
błyski,
punkty,
gwiazdki,
koła,
plamy kolorów,
figury geometryczne.
Walsh opisuje właśnie tego typu omamy związane z okolicami potylicznymi. Podobne efekty uzyskiwano podczas elektrycznej stymulacji kory. Stymulacja płata potylicznego wywoływała błyski, kolory, cienie czy wrażenie ruchu. Natomiast rozbudowane sceny i postacie wiązały się częściej z bardziej złożonym pobudzeniem okolic skroniowo-potylicznych.
Czyli V1 możemy potraktować trochę jak artystę konceptualnego:
- Moje najnowsze dzieło nosi tytuł „Małe zielone koło w prawym dolnym rogu pola widzenia”.
- A coś bardziej spektakularnego?
- Haha, Nie.
I tym razem metafora całkiem dobrze oddaje podstawową zasadę:
Proste właściwości obrazu są analizowane wcześniej. Natomiast pełna scena wymaga działania znacznie bardziej rozbudowanych sieci.
Podsumowanie
No dobrze. To miał być łatwy tekst.
„Płat potyliczny, wzrok, trochę anatomii, kilka ciekawostek, wysłać do szefa i Tony Soprano”.
Tymczasem zaczęliśmy od bruzdy ostrogowej, przeszliśmy przez skrzyżowanie wzrokowe, wzgórze, retinotopię, pola recepcyjne, V1, V2, V3, V4, V5/MT, szlaki „co” i „gdzie”, a skończyliśmy przy człowieku, który potrafi napisać zdanie, ale nie może go przeczytać, niewidomym przekonanym, że widzi, i pacjencie, który nie widzi bodźca, ale jednak wie, gdzie się on znajduje.
Zatem owszem. Płat potyliczny odpowiada przede wszystkim za wzrok. Tyle że „wzrok” okazał się pojęciem podobnym do określenia „transport publiczny”. Na pierwszy rzut oka dwa słowa.
Potem pojawiają się tramwaje, autobusy, rozkłady, zajezdnie, przesiadki, remonty, sterowanie ruchem i człowiek na Rondzie Kaponiera, który od dziesięciu minut próbuje zrozumieć, dlaczego Google Maps kazało mu zejść trzy poziomy pod ziemię.
A przecież każdego dnia robimy coś znacznie bardziej skomplikowanego niż korzystanie z komunikacji miejskiej.
Patrzymy. Światło trafia do oczu. Informacja zostaje przekształcona na sygnał nerwowy. Dociera do V1. Mózg analizuje położenie, kontrast, krawędzie i orientację. V2 zaczyna łączyć elementy w bardziej złożone struktury. V3 analizuje dalej formę, przestrzeń i część informacji o ruchu. V4 szczególnie mocno angażuje się w analizę barwy i bardziej złożonego kształtu. V5/MT zajmuje się przede wszystkim ruchem. Informacje rozchodzą się do kolejnych obszarów. Łączą się z pamięcią. Językiem. Przestrzenią. Działaniem. Po wykonaniu całej tej gigantycznej pracy dostajemy do świadomości:
„Kubek”.
Bez informacji:
„Przetwarzanie obrazu zakończone pomyślnie”.
Bez paska postępu. Bez instrukcji obsługi. Bez konieczności ręcznego zatwierdzania siedemnastu komunikatów.
Mózg robi wszystko w tle, dlatego kiedy mówimy:
„No widzisz…”
najczęściej tak naprawdę mamy na myśli:
„No rozumiesz”.
I po przygotowaniu tego artykułu wydaje mi się, że jest to dużo bardziej trafne powiedzenie, niż początkowo przypuszczałem. A teraz już naprawdę mogę wrócić do Rodziny Soprano. Do zobaczenia w następnym odcinku! Arrivederci fratelli!
Źródła
1. Walsh K. W., Darby D. G., Neuropsychologia kliniczna Walsha, rozdział 7: „Płaty potyliczne”.
2. Rehman A., Al Khalili Y., Neuroanatomy, Occipital Lobe, StatPearls, NCBI Bookshelf.
3. Gupta M., Ireland A. C., Omole A. E. i in., Neuroanatomy, Visual Pathway, StatPearls, NCBI Bookshelf.
4. Schmolesky M., The Primary Visual Cortex, w: Webvision: The Organization of the Retina and Visual System, University of Utah Health Sciences Center.
5. Hubel D. H., Wiesel T. N. (1959), Receptive fields of single neurones in the cat's striate cortex, „The Journal of Physiology”, 148(3), 574–591. DOI: 10.1113/jphysiol.1959.sp006308.
6. Hubel D. H., Wiesel T. N. (1962), Receptive fields, binocular interaction and functional architecture in the cat's visual cortex, „The Journal of Physiology”, 160(1), 106–154. DOI: 10.1113/jphysiol.1962.sp006837.
7. Engel S. A., Glover G. H., Wandell B. A. (1997), Retinotopic organization in human visual cortex and the spatial precision of functional MRI, „Cerebral Cortex”, 7(2), 181–192. DOI: 10.1093/cercor/7.2.181.
8. Anzai A., Peng X., Van Essen D. C. (2007), Neurons in monkey visual area V2 encode combinations of orientations, „Nature Neuroscience”, 10(10), 1313–1321. DOI: 10.1038/nn1975.
9. Smith A. T., Greenlee M. W., Singh K. D., Kraemer F. M., Hennig J. (1998), The processing of first- and second-order motion in human visual cortex assessed by functional magnetic resonance imaging (fMRI), „Journal of Neuroscience”, 18(10), 3816–3830. DOI: 10.1523/JNEUROSCI.18-10-03816.1998.
10. McKeefry D. J., Zeki S. (1997), The position and topography of the human colour centre as revealed by functional magnetic resonance imaging, „Brain”, 120(12), 2229–2242. DOI: 10.1093/brain/120.12.2229.
11. Goodale M. A., Milner A. D. (1992), Separate visual pathways for perception and action, „Trends in Neurosciences”, 15(1), 20–25. DOI: 10.1016/0166-2236(92)90344-8.
12. Ritchie J. B., Montesinos S., Carter M. J. (2024), What Is a Visual Stream?, „Journal of Cognitive Neuroscience”, 36(12), 2627–2638. DOI: 10.1162/jocn_a_02191.
13. Frankowski J. C., Foik A. T., Tierno A., Machhor J. R., Lyon D. C., Hunt R. F. (2021), Traumatic brain injury to primary visual cortex produces long-lasting circuit dysfunction, „Communications Biology”, 4, 1297. DOI: 10.1038/s42003-021-02808-5.
O autorze
Mateusz Koperwas
Fundraiser i opiekun stażystów w Fundacji Otwartych Możliwości, terapeuta manualny.
Chcesz współpracować lub potrzebujesz więcej informacji?
Skontaktuj się z nami – chętnie odpowiemy na Twoje pytania i omówimy możliwości współpracy.
Napisz do nas